



Биологичният живот всъщност е една непрекъсната борба с вероятностите. Във всяка сложна химична смес, каквато е живата клетка, има хиляди потенциални сценарии за взаимодействие между молекулите. Термодинамиката допуска множество реакции, водещи до разрушаване на структурите и увеличаване на ентропията. Живата материя обаче реализира само малка част от тези сценарии – тези, които са необходими за поддържане на хомеостазата, репликацията и растежа.
Дълго време физиката и биологията разглеждаха този процес от различни ъгли. Биолозите описваха механизмите на регулиране – ензими, инхибитори, мембрани. Физиците изчисляваха енергийния баланс: колко енергия постъпва и колко се разсейва като топлина. Но в това уравнение липсваше една много важна променлива. Знаехме как да изчислим енергията, използвана за извършване на дадено действие, но нямахме инструменти, с които да оценим цената на бездействието – усилията, необходими за предотвратяване на хаотични процеси и насочване на химическия поток по единствения правилен път.
Нова теоретична работа, публикувана в Journal of Statistical Mechanics от група изследователи от Института по индустриални науки към Токийския университет и Виенския университет, запълва тази празнина. Авторите предлагат математически формализъм, който позволява „точността“ на химическата мрежа да се изрази в единици термодинамични разходи. Те доказаха, че всяко ограничение има цена, и изведоха формулите, които показват колко ентропия струва изолирането на полезния метаболитен път от безполезния химически шум.
Проблемът със скритите разходи
Класическата термодинамика работи с макроскопични състояния. Ако една система премине от състояние А в състояние Б, можем да изчислим промяната на свободната енергия и отделената топлина. В мрежите от химични реакции обаче е важен не само резултатът, но и траекторията.
Да вземем една разклонена мрежа, в която началните реактиви могат да се превърнат в продукти по десетки различни начини. Клетката се нуждае само от една специфична траектория – последователност от реакции, катализирани от специфични ензими. Всички други пътища са паразитни: те разхищават ресурси и създават токсични странични продукти. За да може системата да работи, тя трябва да наложи строги ограничения върху топологията на мрежата, като на практика прекъсне ненужните връзки.
Авторите на изследването поставят въпроса: могат ли да се определят количествено термодинамичните разходи за създаване и поддържане на такива ограничения? Тяхната работа показва, че разходите за експлоатация на всяка система се състоят от два компонента, единият от които досега е бил пренебрегван при изчисляването на ефективността.
Двата компонента на термодинамичните разходи
Използвайки теорията на големите отклонения – раздел от теорията на вероятностите, който изучава изключително редките събития в случайните процеси – изследователите изведоха нова функция на разходите за химичните пътища. Тя се разделя на две събираеми величини:
- Цената на поддръжката. Това е традиционна величина, която се възприема в рамките на неравновесната термодинамика. Тя отразява степента на производство на ентропия, необходима за поддържане на потока от вещества през системата. За да може дадена химична реакция да протича в дадена посока с дадена скорост, системата трябва да се поддържа в неравновесно състояние (например чрез постоянно подаване на субстрат и отстраняване на продукт). Тези разходи са неизбежни за всеки динамичен процес.
- Разходите на ограниченията. Това е нова метрика, въведена от авторите. Тя характеризира статистическото усилие, необходимо, за да се гарантира, че потокът следва само избрания път и че вероятностите за реакции, протичащи по алтернативни пътища, са сведени до нула.
При стохастичния (случаен) характер на химичните взаимодействия вероятността молекулите да взаимодействат единствено по един сценарий, пренебрегвайки другите налични, е изключително малка. Колкото повече ограничаваме една система, като прекъсваме алтернативите, толкова по-малко вероятно става това състояние от статистическа гледна точка. Цената на ограничението е мярка за тази неправдоподобност, изразена чрез скоростта на производство на ентропия. Всъщност това е себестойността на информацията и структурата.
Еквивалентността на химията и електричеството
За да анализират поведението на такива системи в режим, близък до термодинамичното равновесие (линеен режим), авторите използват строга математическа аналогия с електрическите вериги. Това позволява законите на Кирхоф и Ом да бъдат приложени към биохимията.
В този модел:
- Потокът на веществото чрез реакциите е аналогичен на електрическия ток.
- Разликата в химичния потенциал действа като напрежение.
- Самите реакции действат като резистори със съпротивление.
От електротехниката е известно следното правило: когато резисторите са свързани паралелно, общото съпротивление на веригата намалява. Колкото повече пътища са на разположение за тока, толкова по-лесно е той да протича. Ако започнем да режем проводниците, оставяйки само една верига от резистори, общото съпротивление на системата се увеличава.
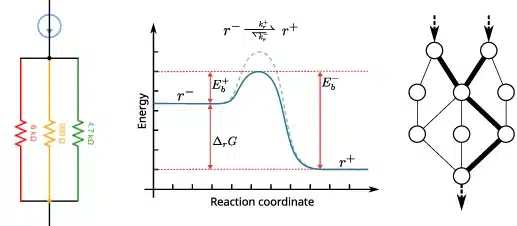
Авторите доказват математически, че този принцип е валиден и за химическите мрежи. Изолирането (отделянето) на тесен метаболитен път от по-широката мрежа винаги увеличава ефективното съпротивление на системата. Следователно е необходима по-голяма движеща сила (разлика в химичния потенциал), за да се поддържа същият поток от вещества през изолирания път, което води до по-големи енергийни загуби.
Това води до контраинтуитивен извод: в близост до равновесието специализацията винаги е енергетично неизгодна. От термодинамична гледна точка за системата е по-удобно да използва всички налични пътища на реакция, отколкото да се ограничава до един-единствен път.
Ролята на катализаторите за преодоляване на термодинамичната бариера
Ако специализацията увеличава съпротивлението и енергийните разходи, защо биологичната еволюция е тръгнала по пътя на създаване на високоспециализирани ензимни вериги?
Изследването дава отговор чрез анализ на ролята на кинетичните параметри. В една химична мрежа съпротивлението на реакцията зависи от височината на енергийната бариера (енергията на активиране). Ензимите катализатори понижават тази бариера.
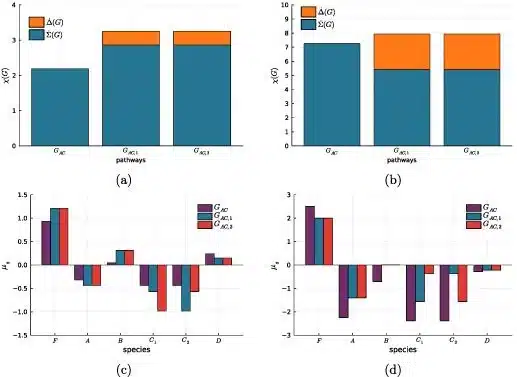
Моделирането на прости четири- и петкомпонентни системи показа как работи този компенсационен механизъм. Катализаторът значително намалява съпротивлението на целевия път. Въпреки че блокирането на алтернативните реакции (цената на ограничаването) все още изисква заплащане чрез ентропия, печалбата от намаляването на съпротивлението в основния път надхвърля тези разходи.
По този начин ензимите не просто ускоряват реакциите. От гледна точка на мрежовата термодинамика те променят топологията на енергийния ландшафт, така че да направят един термодинамично неблагоприятен (поради високата специфичност) процес приемлив. Еволюцията по същество подбира такива параметри на катализаторите, за да сведе до минимум общите разходи за поддръжка и ограничения.
Парадоксите на неравновесните състояния
Най-задълбочената част от изследването се отнася до системи, работещи далеч от равновесното състояние. Живите клетки са точно такива системи: те съществуват в поток от енергия и материя, който е далеч от състоянието на термодинамичен покой.
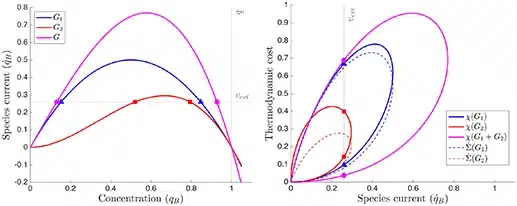
В линеен режим (близък до равновесния) правилото „ограничението увеличава разходите“ действа безотказно. При прехода към сложни неравновесни процеси, включващи автокатализа (когато продуктът на реакцията ускорява самата реакция), обаче възникват нови ефекти.
Авторите откриха, че в близост до точки на бифуркация (нестабилни състояния, при които системата може рязко да промени режима си на работа) строгата йерархия на разходите може да бъде нарушена. При определени условия един изолиран път може да бъде термодинамично „по-евтин“ от цялата мрежа, дори без да се отчита действието на катализаторите. Това откритие подобрява разбирането ни за пребиологичната еволюция. То подсказва как стабилните реакционни цикли биха могли да се установят спонтанно в първичния химичен бульон още преди появата на сложните белтъчни катализатори, просто защото тези цикли са термодинамично облагодетелствани при неравновесни условия.
Значение на работата
Предложеният формализъм прехвърля понятието за биологична специфичност от категорията на описателните характеристики в категорията на физичните величини.
На първо място, той предоставя нов инструмент за синтетичната биология и биоинженерството. При проектирането на изкуствени метаболитни пътища (например за производство на лекарства в бактерии) инженерите вече могат да изчисляват термодинамичната граница на ефективност. Формулите показват, че е невъзможно безкрайно да се увеличи точността на синтеза, без да се увеличат енергийните разходи за потискане на страничните реакции.
Второ, работата хвърля светлина върху произхода на сложната организация. Тя показва, че структурата на метаболитните мрежи не е случайна. Топологията на клетъчния метаболизъм е резултат от физическа оптимизация, при която системата търси баланс между необходимостта от осъществяване на реакциите (поддържане) и необходимостта от контролиране на техния маршрут (ограничаване).
Свикнали сме да мислим, че редът изисква енергия. Това изследване изяснява това твърдение: не само редът изисква енергия, но и пресичането на хаоса. Вече е ясно как да се отчита това прекъсване в единици ентропия.
 Всичко важно от света на технологиите, директно в пощата ти.
С абонирането приемате нашите Условия и Политика за поверителност. Може да се отпишете с един клик по всяко време.
Коментирайте статията в нашите Форуми. За да научите първи най-важното, харесайте страницата ни във Facebook, и ни последвайте в Google Новини, TikTok, Telegram и Viber или изтеглете приложението на Kaldata.com за Android, iPhone, Huawei, Google Chrome, Microsoft Edge и Opera!
